


Page 140 - 南京医科大学自然版
P. 140
第46卷第10期
               ·1570 ·                           南 京    医 科 大 学 学         报                        2026年10月


                                 [13]
              GBM)依赖外源性Gln         ,肝激酶B1(liver kinase B1,      酸合成,同时增强 Gln 依赖性,从而提高 GLS1 抑制
              LKB1)缺失通过AMPK失活解除对乙酰辅酶A羧化                         敏感性。这三重因素相互交织,精准识别 Gln 代谢
                                                                                                    [14]
              酶(acetyl⁃CoA carboxylase,ACC)的抑制,促进脂肪             异质性是实现恶性肿瘤分层治疗的关键 。

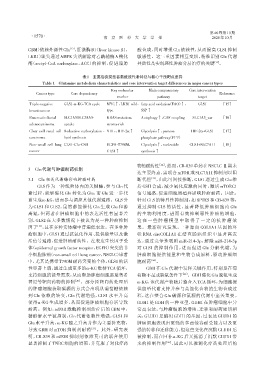
                                       表1 主要癌症类型谷氨酰胺代谢特征与核心干预靶点差异
                     Table 1 Glutamine metabolism characteristics and core intervention target differences in major cancer types
                                                    Key molecular     Main compensatory  Core intervention
                  Cancer type     Core dependency                                                     Reference
                                                       marker             pathway           target
               Triple⁃negative  GLS1⁃α⁃KG⁃TCA cycle  MYC↑,LKB1 wild⁃ fatty acid oxidation(FAO)↑,  GLS1  [15]
               breast cancer                      type            SSP↑
               Pancreatic ductal  SLC1A5/SLC38A5⁃  KRAS mutation,  Autophagy↑,CAF coupling  SLC1A5_var  [16]
               adenocarcinoma  uptake             stroma⁃rich

               Clear cell renal cell Reductive carboxylation ⁃ VHL⁃,HIF⁃2α↑  Glycolysis↑,pentose  HIF⁃2α+GLS1  [17]
               carcinoma       lipid synthesis                    phosphate pathway(PPP)
               Non⁃small cell lung GLS1⁃Glu⁃GSH   EGFR⁃T790M,     Glycolysis↑,nucleotide  GLS1+SLC7A11  [18]
               cancer                             GLS1↑           synthesis↑


                                                                物的耐药性     [22] ,然而,CB⁃839 单药在 NSCLC Ⅱ期未
              3  Gln代谢与肿瘤耐药机制
                                                                达主要终点,需联合 mTOR 或 SLC7A11 抑制剂以阻
              3.1  Gln相关代谢酶影响肿瘤耐药                               断代偿   [23] ,由此可间接推断,GLS1 通过生成 Glu 维
                  GLS 作为一种线粒体内的关键酶,参与 Gln 代                     持 GSH 合成,减少氧化应激的同时,激活 mTORC1
              谢过程,能够催化 Gln 转化为 Glu,而 Glu 进一步代                   信号通路,促进细胞增殖并影响肿瘤耐药。因此,
              谢生成α⁃KG,进而参与调控其他代谢通路。GLS分                         针对 GLS 的特异性抑制剂,如 BPTES 和 CB⁃839 等,
              为 GLS1 和 GLS2,虽然都能催化 Gln 生成 Glu 和游                通过抑制 GLS 的活性,显著降低肿瘤细胞内 Gln
              离氨,但两者在肿瘤细胞中的表达活性有显著差                             的生物利用度,进而有效抑制恶性肿瘤的增殖,
              别,GLS2 在大多数情况下被认为是一种肿瘤抑制                          这 在 一 些 肿 瘤 模 型 中 取 得 了 一 定 的 抗 肿 瘤 效
              因子  [19] ,且在多种实体瘤中普遍低表达。在多种肿                      果。最新研究发现,一种源自 COL1A1 基因的环
              瘤细胞中,GLS1 通过抗氧化作用、提供能量以及激                         状 RNA circCOL1A1 在结直肠癌组织中显著高表
              活信号通路,促进肿瘤耐药性。在表皮生长因子受                            达,通过竞争性吸附 miR⁃214⁃3p,解除 miR⁃214⁃3p
              体(epidermal growth factor receptor,EGFR)突变的非      对 GLS1 的抑制作用,进而促进 Gln 分解代谢,为
              小细胞肺癌(non⁃small cell lung cancer,NSCLC)患者         肿瘤细胞提供能量和生物合成原料,驱动肿瘤细
              中,尤其是携带 T790M 耐药突变的个体,GLS1 的活                     胞耐药   [24] 。
              性显著上调,通过生成更多的α⁃KG维持TCA循环,                              GDH 在 Gln 代谢中发挥关键作用,特别是在葡
              支持细胞的能量需求,从而帮助肿瘤细胞逃避奥希                            萄糖不足或缺氧条件下           [25] 。GDH催化Glu脱氨生成
              替尼等靶向药物的抑制           [20] 。部分经靶向药处理后              α⁃KG,该代谢产物随后整合入 TCA 循环,为细胞提
              的肿瘤细胞获取碳源的方式会出现从葡萄糖依赖                             供能量代谢支持并参与高能化合物的生物合成过
              到 Gln 依赖的转变,Gln 代谢增强,GLS1 水平升高                    程,这在整合 Gln 碳源和氮源的代谢中至关重要。
              使得α⁃KG 生成增多,从而促进肿瘤细胞存活导致                          GDH1 是 GDH 的一种亚型,GDH1 在肿瘤细胞中异
              耐药。例如,mTOR 激酶抑制剂治疗后的 GBM 中,                       常高表达,与肿瘤细胞的增殖、迁移和耐药密切相
              糖酵解水平被抑制,Gln 代谢依赖性增强,GLS1 和                       关,GLUD1 是编码 GDH1 的基因,过表达 GLUD1 的
              Glu 水平升高,α⁃KG 随之升高并作为主要补充物,                       肺癌细胞表现出更强的多西他赛耐受能力以及更
              导致 GBM 对 mTOR 抑制剂耐药          [21] 。此外,研究表         强的转移和迁移能力,但这些变化在沉默GLUD1后
              明,CB⁃839 和 mTOR 抑制剂依维莫司的联合使用                      被抑制,而在回补α⁃KG 后又抵消了沉默 GLUD1 带
              显著抑制了 TNBC 细胞的增殖,并克服了对化疗药                         来的抑制作用       [26] ,因此可以推测化疗药处理后的

